前々回、鳥類のコロナウイルスには、同一個体に再々感染し、感染するつど感染したコロナウイルスに対する抗体を産生する、すなわち二度罹り、三度罹りは珍しくないことを紹介しました。
前回は、鳥類のコロナウイルスでは、一度鳥類に感染すると感染は長期間に及び、持続感染と言われる感染が成立する、とくに免疫機能が発達していない幼若な時期のヒナに感染するとその傾向が強く現れることを紹介しました。
インフルエンザウイルス感染とは異なる種類の感染が、コロナウイルス感染では起きる可能性があります。
今回は、コロナウイルスの変異は珍しくなく、様々な変異が起きていることを、鳥類のコロナウイルスである鶏伝染性気管支炎(avian infectious bronchitis: IB)ウイルスを用いて筆者らがかつて行った実験をもとに紹介します。
鳥類のコロナウイルス感染病の一つであるIB(鶏には解剖学上気管支は存在しないのですが、病名だけはあるのです)の発生が続いたために、養鶏大国のアメリカは大きな被害を受けました。アメリカを中心に早くから研究が進められた結果、IBウイルスは長い間、コロナウイルスの代表的なウイルスでした。
コロナウイルスで認められる変異
鳥類のコロナウイルスであるIBウイルスに変異が起きることは、現象として半世紀以上前からとらえられていました。ただ「変異」という認識は持たれていませんでした。飼育されている鶏群に重篤な呼吸器症状を出している鶏が多発して、IBの発生が疑われた場合、病鶏から原因ウイルスを分離して、そのウイルスがIBウイルスであることを特定することが以前の診断手法でした。
診断のためには、次の方法が用いられました。
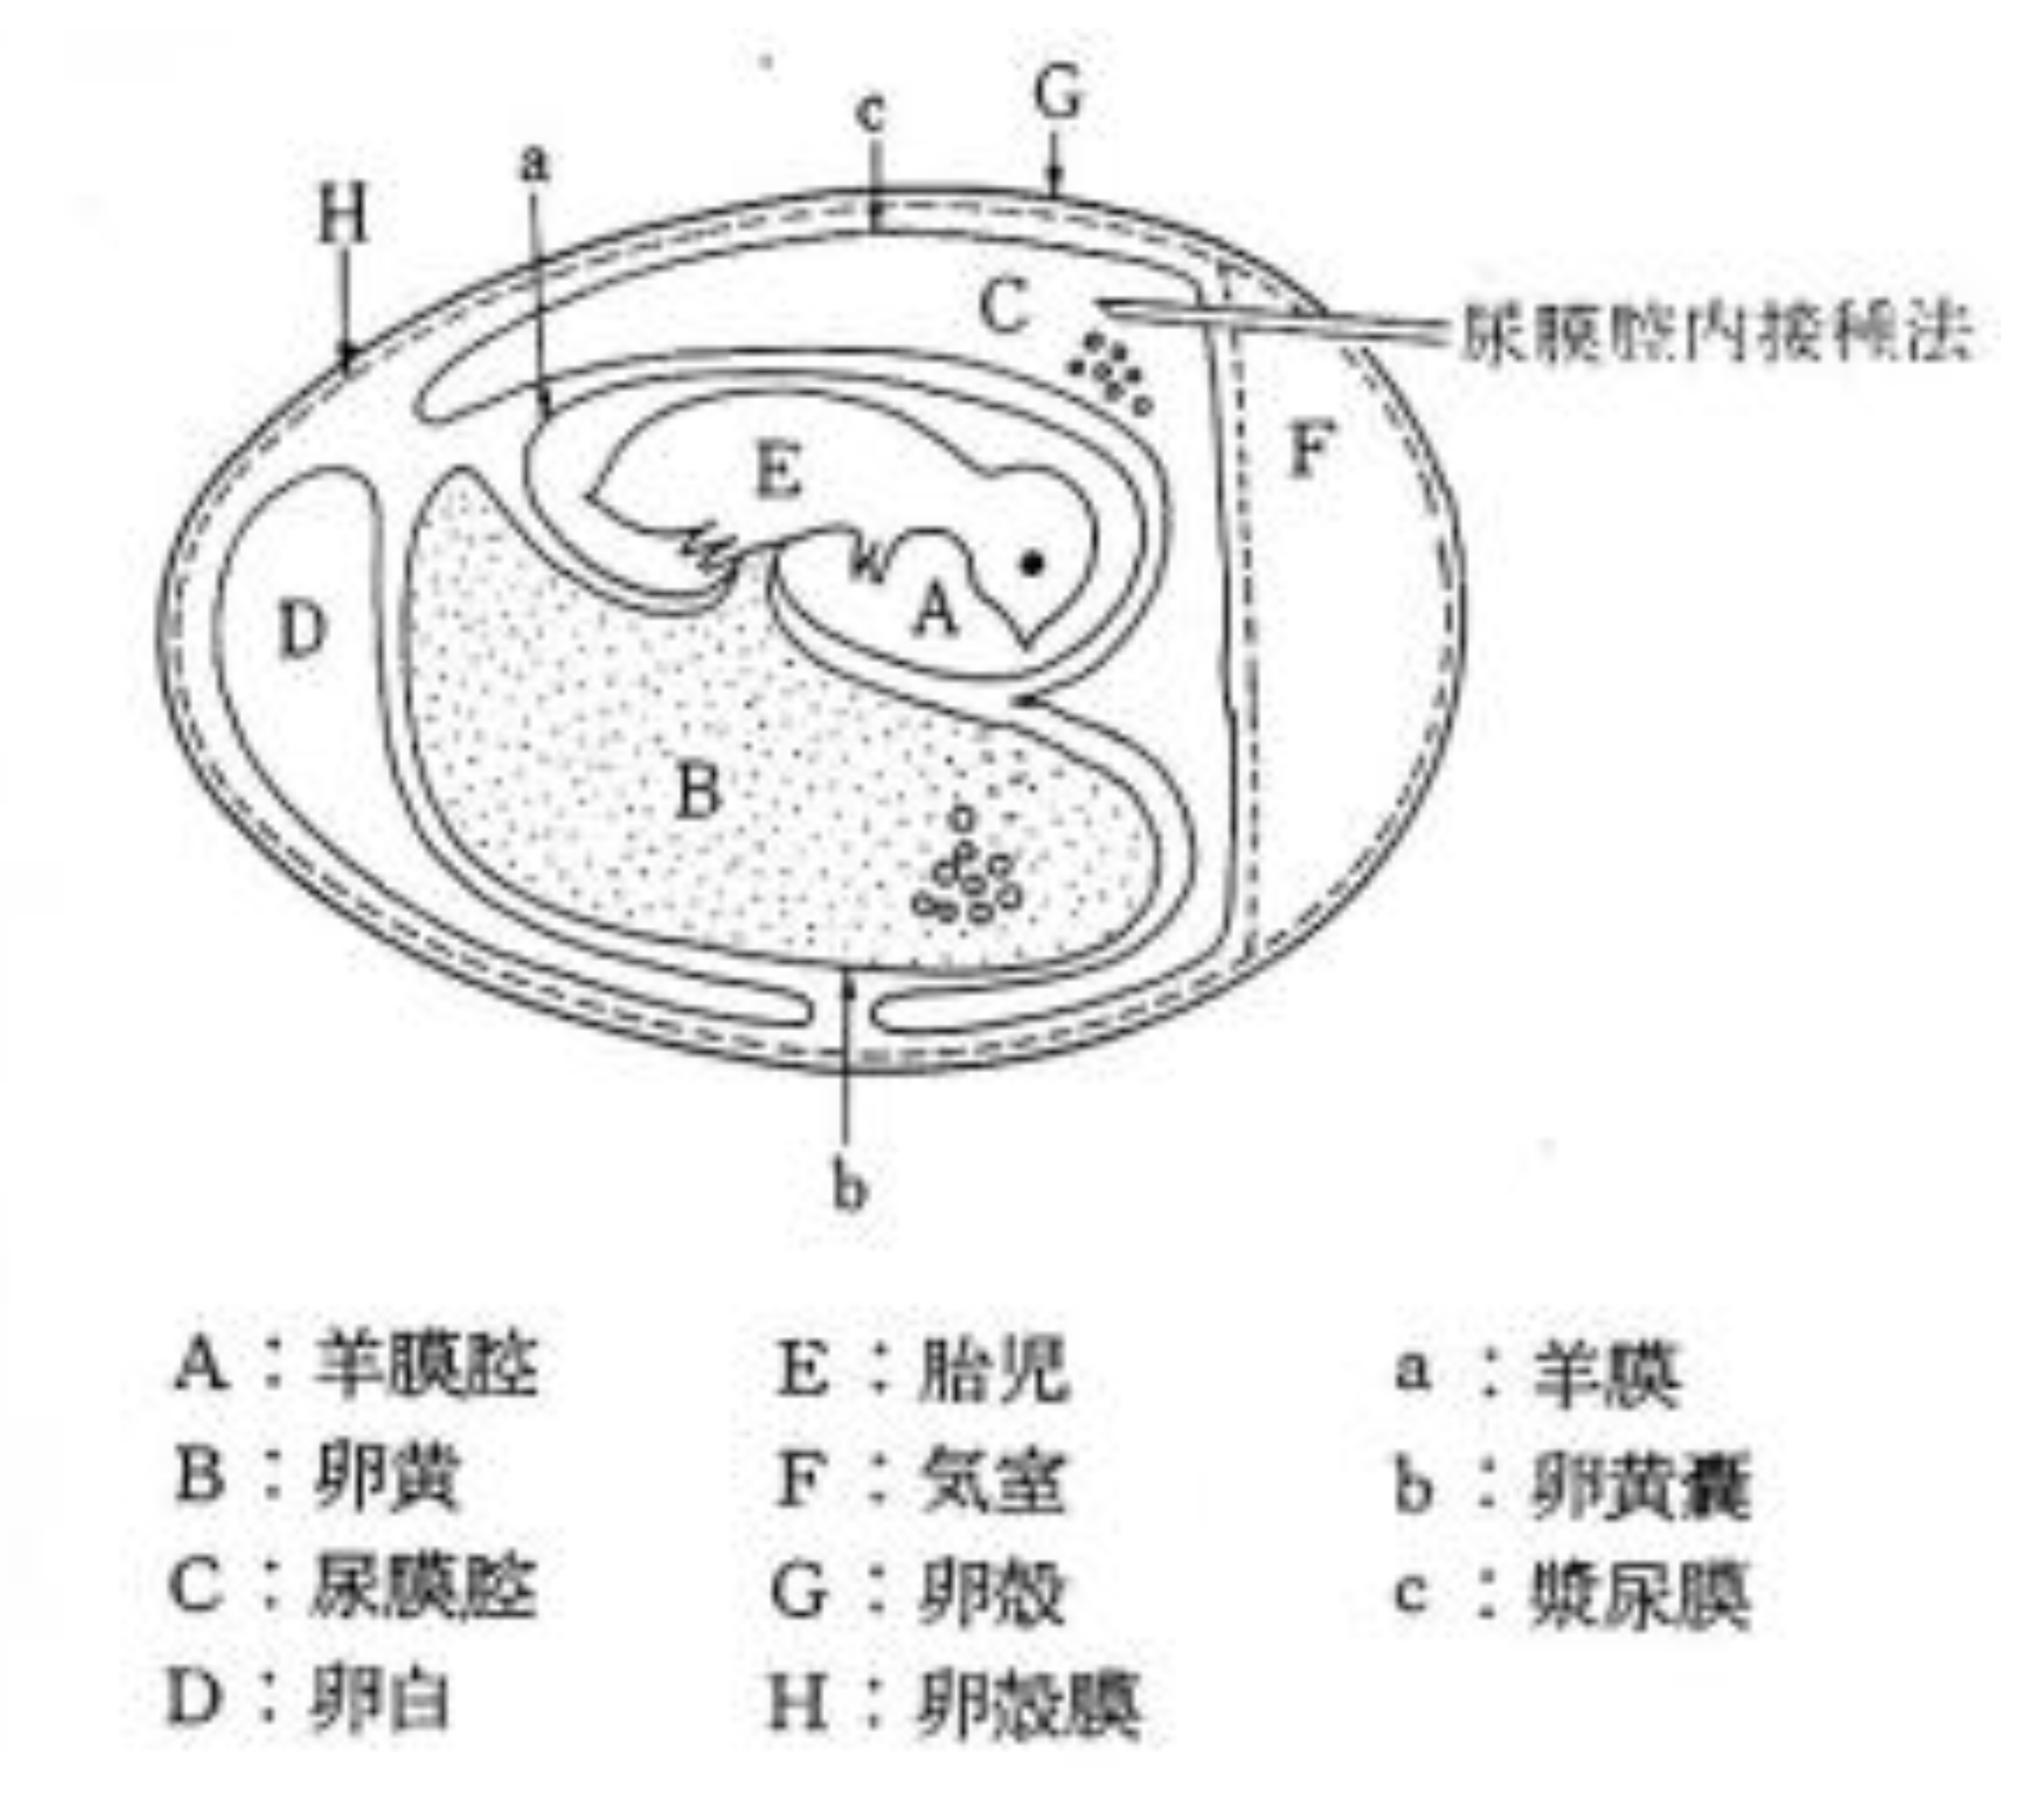
まず、病鶏から肺と気管を摘出し、混合してすりつぶして作成した乳剤を、10日齢発育鶏卵の尿膜腔内に接種して[図1]、37℃で1週間孵卵を続行します。すなわち、鶏胎児にIBウイルスを感染させるのです。
その後、割卵して鶏胎児を取り出し、鶏胎児の発育状況を観察します。胎児の発育が著しく遅滞した場合にIB陽性と診断します[図2]。なお、21日間の孵卵でヒナが産まれます(孵化)。
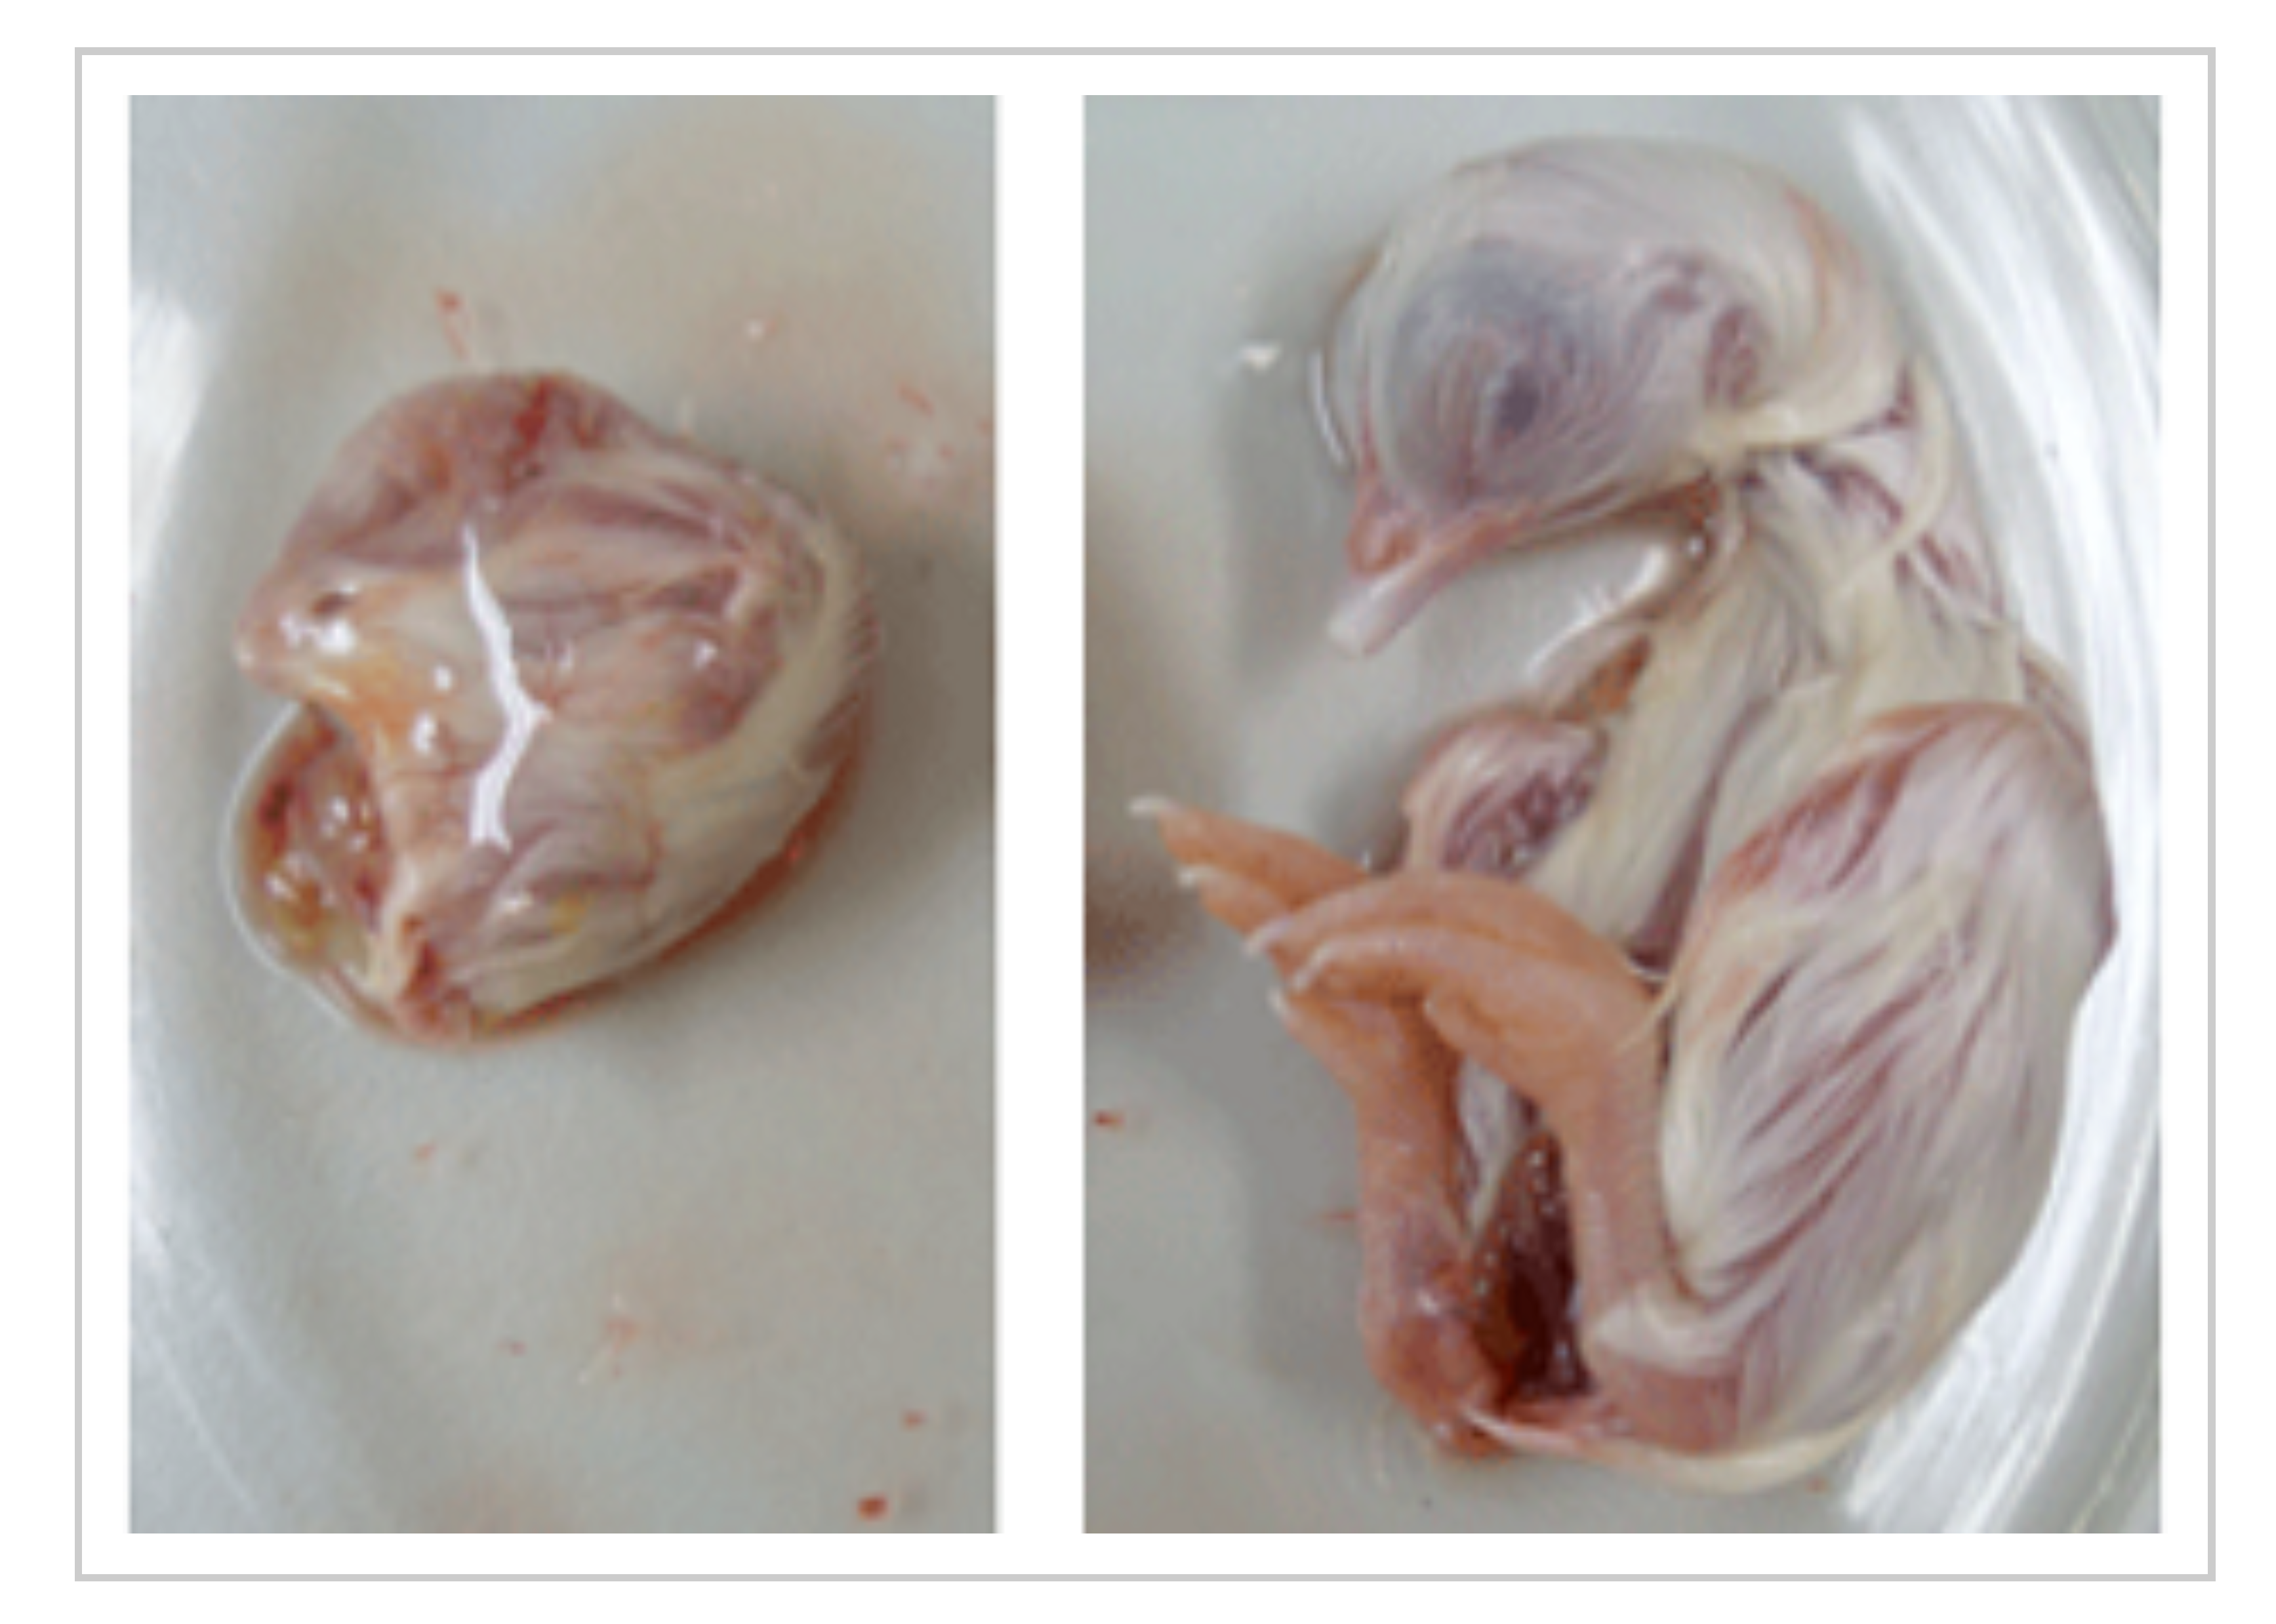
左はIBウイルス接種により発育遅延をきたした胎児。右は正常な胎児
しかし実際には、IBに罹患していてもほとんどの場合鶏胎児の発育に変化は生じません。従って、鶏胎児に変化が生じていなくてもIBウイルスは増殖していると仮定し、この胎児が発育した鶏卵中に存在する尿膜腔液(増殖したウイルスの存在する場所)を採取して、別の10日齢卵に同様に接種します。この操作を3~5回繰り返すことによって、IBウイルス感染鶏胎児の発育の遅延が目視できるまで明確になります[図2]。ここで初めてIBと診断されるのです。
この現象は、IBウイルスを発育鶏卵に何回も継代することにより、ウイルスが鶏胎児に馴化(じゅんか)して胎児の発育に明らかな障害を及ぼすようになったという「変異」が起きたことを証明しているのです。この鶏胎児の発育に変異の起きた発育鶏卵から採取した尿膜腔液をウイルス液として実験に使用します。この尿膜腔液を超低温下で保存します。
実は、この鶏胎児に馴化したIBウイルスを実験的に鶏に感染させても、養鶏場で最初に認められた重篤な臨床症状を鶏に起こすことはありません。鶏に対する病原性は減弱しています。このウイルスを通常IBウイルスとして各種IB実験に使います。
私がIBウイルス研究を始めた1970年代はじめ、IB予防のためのワクチン使用が初めて認可される直前でした。現在では数多くの種類の生ワクチンが世界の養鶏界では広く使われています。
しかし、ワクチン効果は期待されたほど上がっていません。IB生ワクチンを接種しても野外からのIBウイルスの浸襲を阻止することが難しいのです。IBは現在でも制圧が容易ではない大変難しい感染病といわれています。その理由として、このウイルスには多数の血清型があるためと通常説明されています。
筆者は、この理由づけに疑問を持ち、制圧が難しいのは、このウイルスは様々な変異を起こしており、その変異が原因であるのではないかと考えました。その当時、コロナウイルスが変異を起こすことを実験的に証明した報告は世界でなされていませんでした。
試験管内実験でのIBウイルスの変異の確認
様々な動物にコロナウイルス感染病が存在し、また数多くの動物種からコロナウイルスは分離されるのですが、一般的には、コロナウイルスの宿主域は限定されており、動物種を超えての感染は起きないと言われてきました。教科書にもそのように記載されています。
しかし、今回の新型コロナウイルス、SARSウイルス、MERSウイルスの起源はすべてコウモリにあり、いろいろな種類の哺乳類間でのウイルス伝播が起きた末に人にまで感染が及んだ動物由来感染病(人獣共通感染病)と考えられています。したがって、考えられているほどコロナウイルスの宿主域は狭くないのではないかと筆者は予想しています。
30年以上前、鳥類のコロナウイルスであるIBウイルスの詳細な宿主域は分かっていませんでした。人を含む哺乳類にも感染する可能性を筆者は考え、宿主域を調べることに関心を持っていました。最初に、試験管内実験から手をつけました。
その当時、IBウイルスは鶏に感染する鳥類のウイルスであるから、ウイルスの増殖は、発育鶏卵、鶏腎細胞という鳥類由来の細胞でのみ可能と考えられていました。そこで、このIBウイルスの本来の宿主ではないほ乳類由来の細胞で増殖するか否か調べました。いくつかの種類のほ乳類由来の培養細胞を調べたのです。
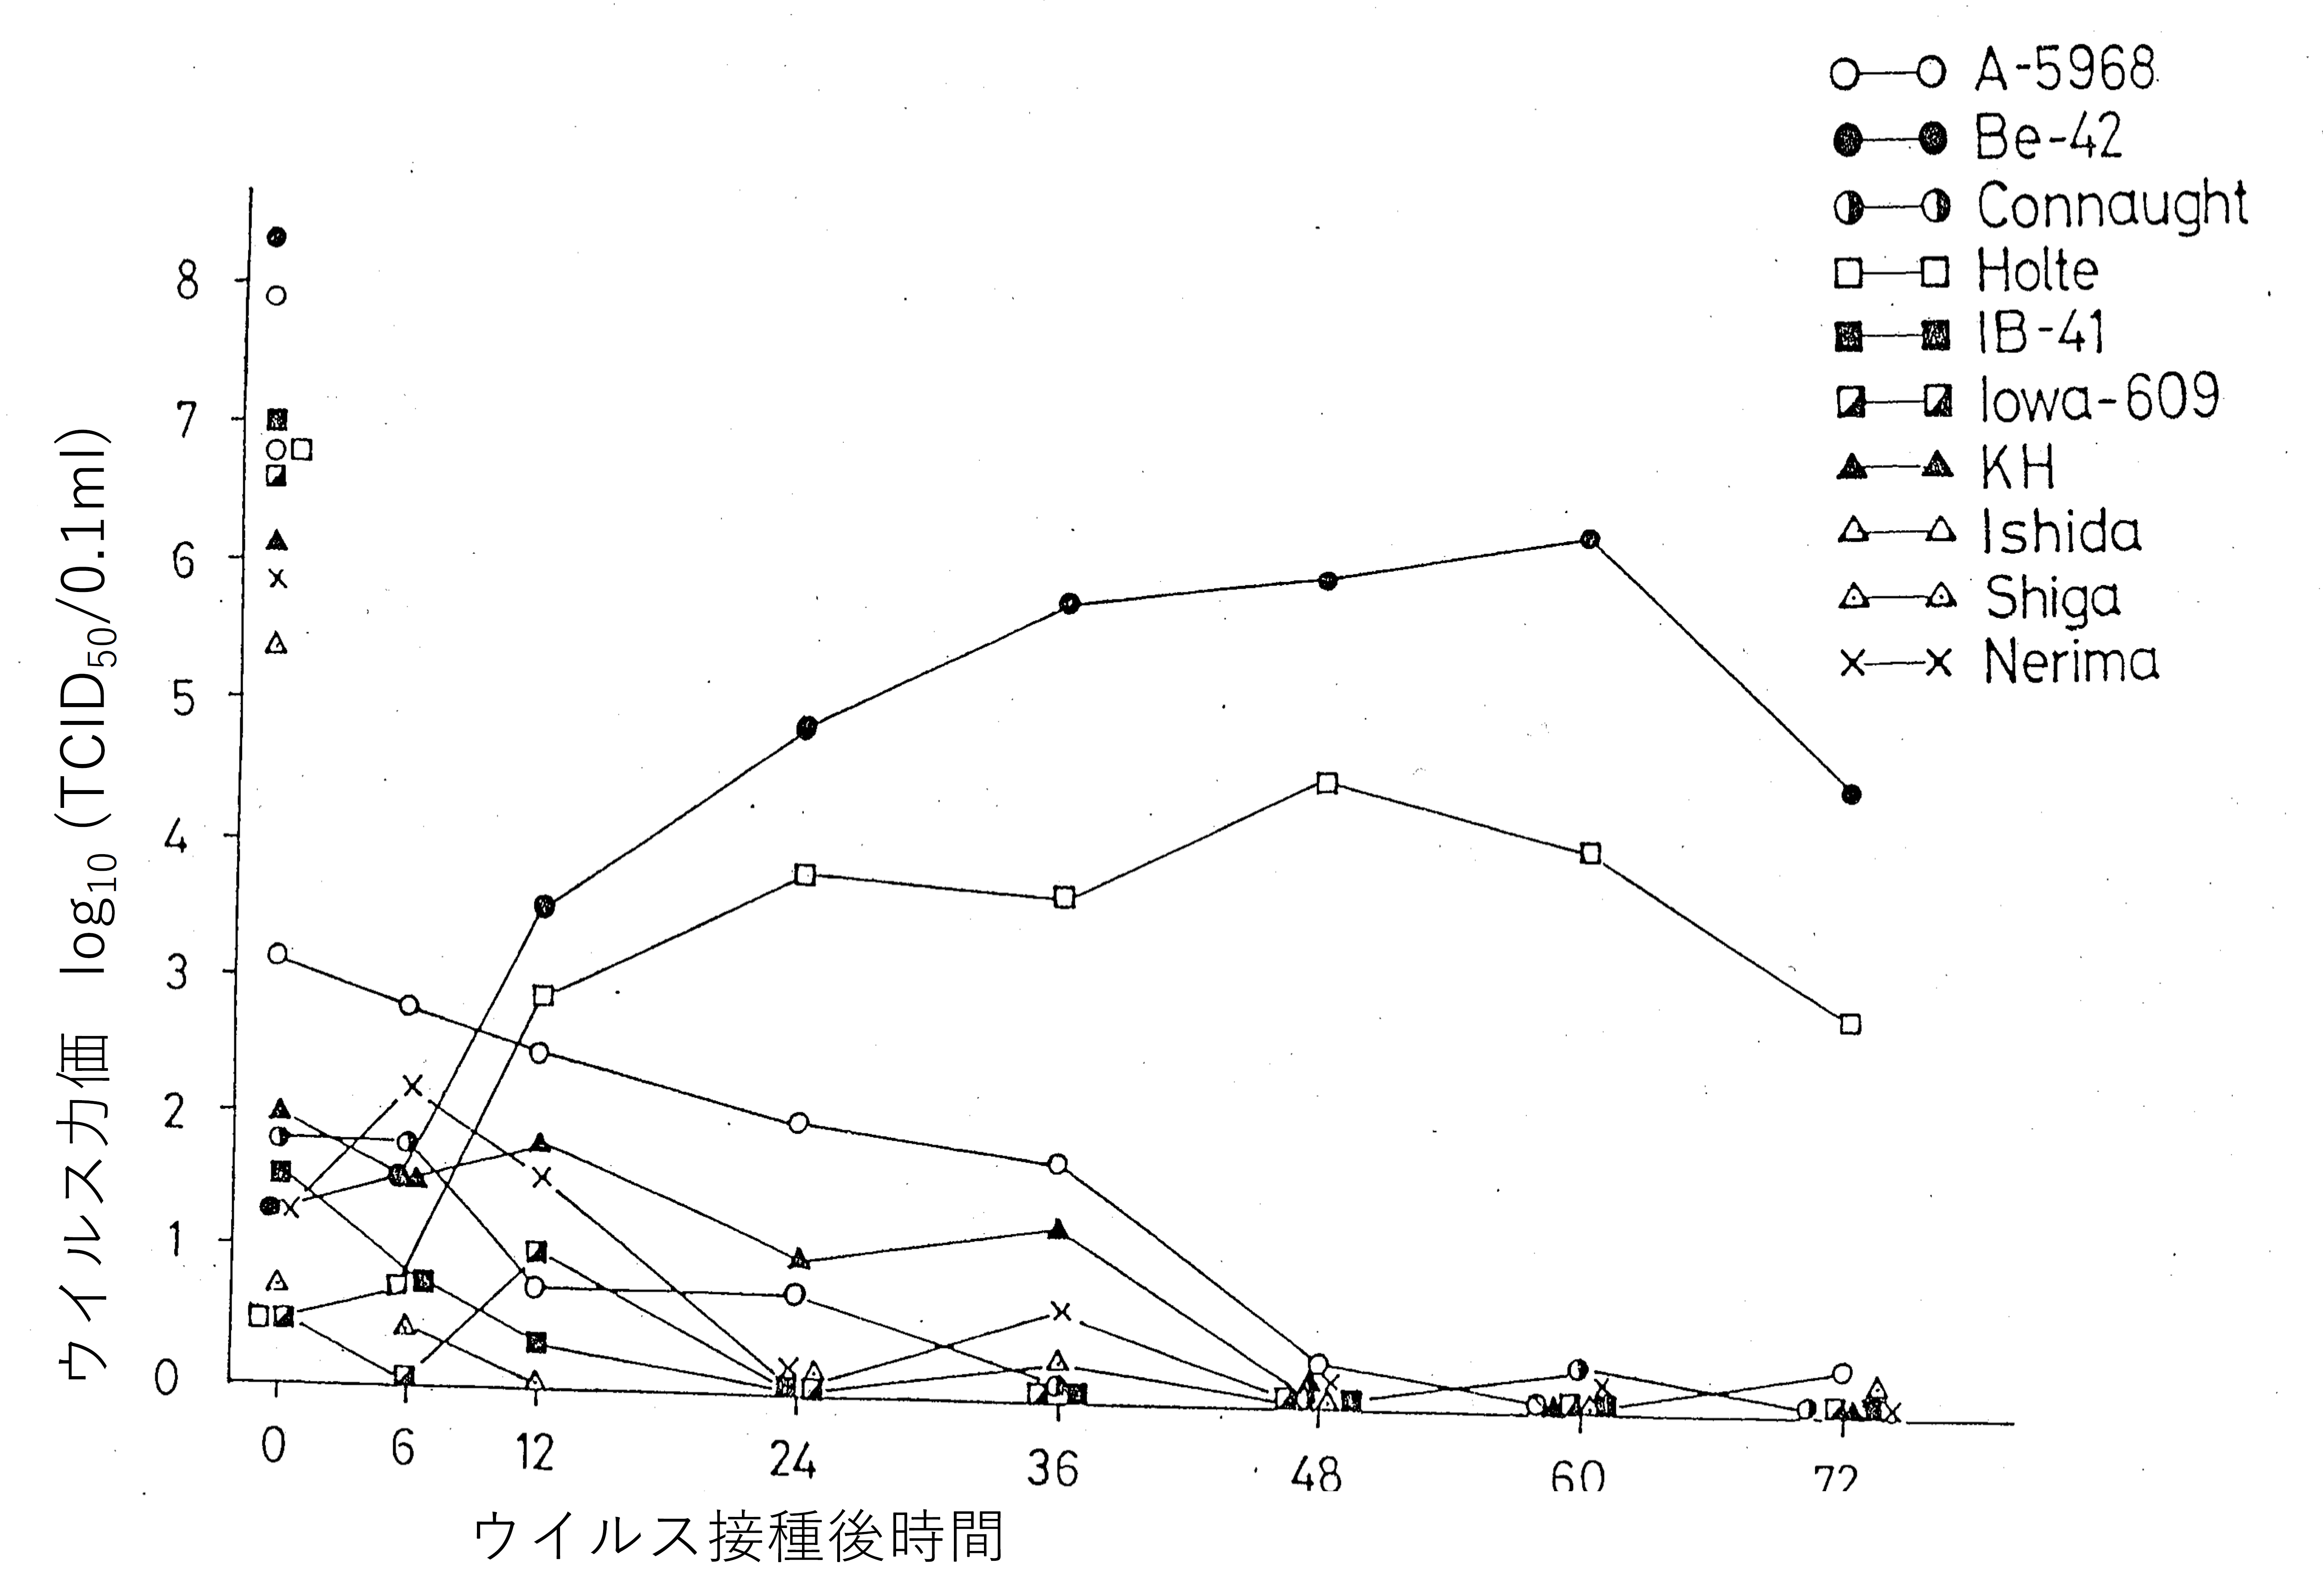
その結果、ハムスターの腎臓由来の細胞であるBHK-21細胞で、増殖できるIBウイルス株のあることが分かりました[図3]。IBウイルスの最古の株と考えられる1930年代にアメリカで分離されたBeaudette-42(Be-42)株がその一つでした。そこで次のステップとして、このウイルス株を、BHK-21細胞で増殖を繰り返すことにより、抗原性を変化させるかもしれないと考えました。
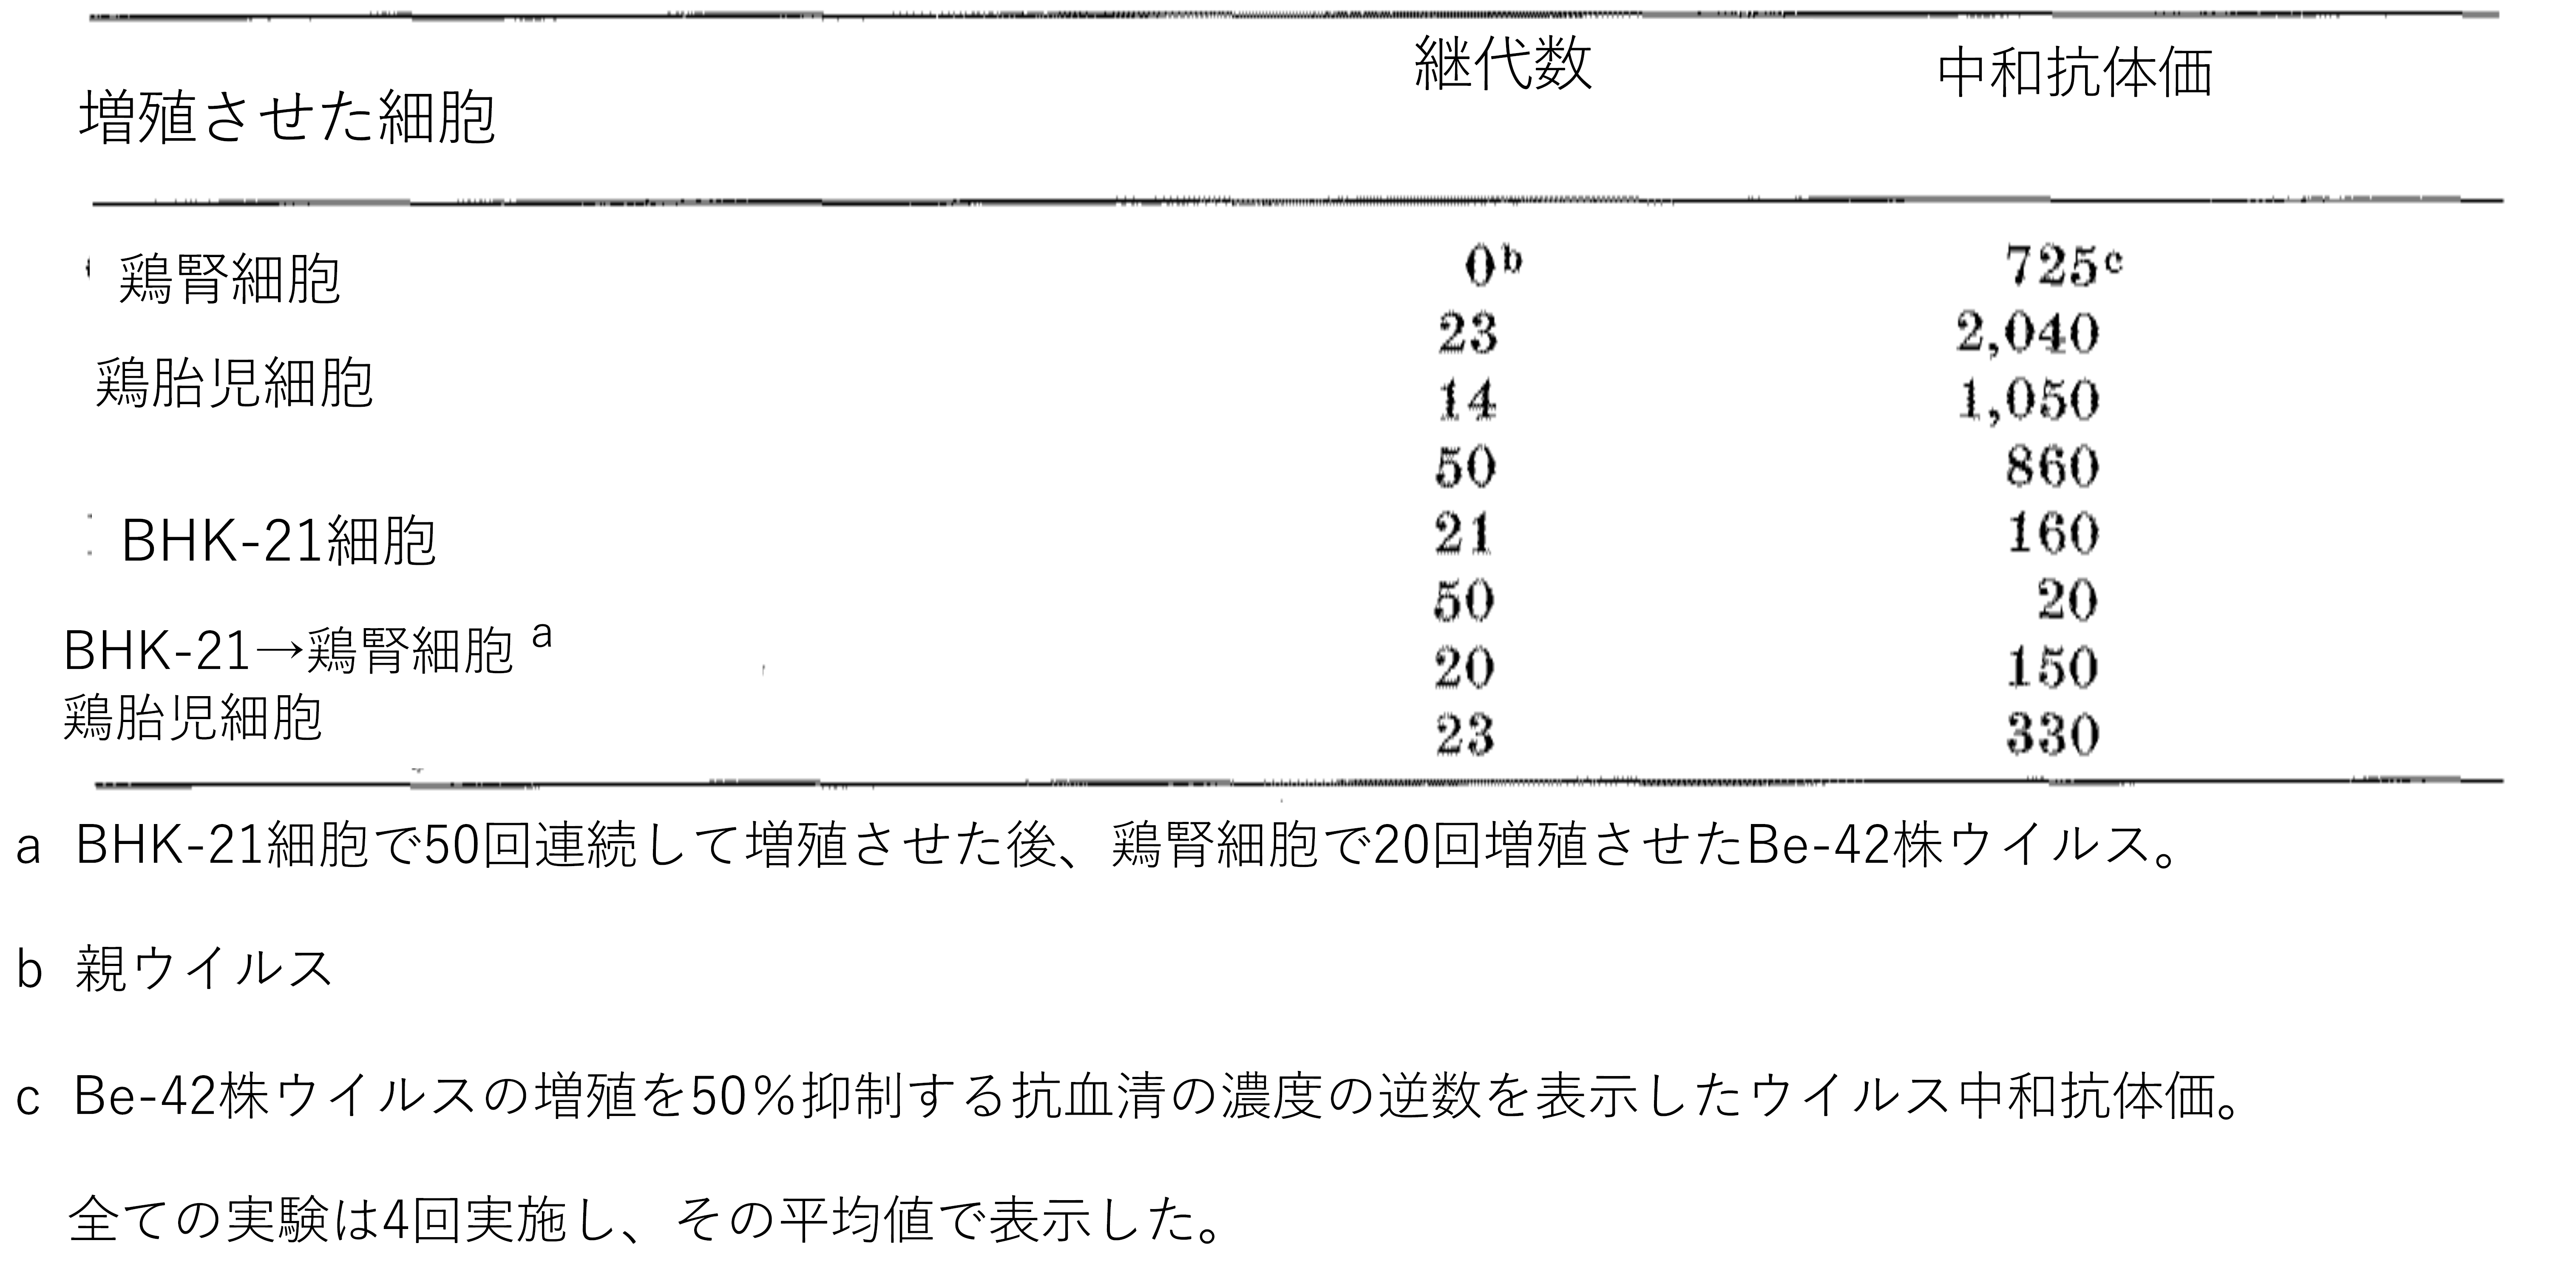
BHK-21細胞でIBウイルスBe-42株の増殖を繰り返しました。そして、その間にこのウイルス株の抗原性に変化が生ずるか否かを、ウイルス中和試験(前々回参照)により調べました。その結果、21回BHK-21細胞で増殖を繰り返したところ抗原性は変化しました。
50回まで増殖を繰り返したところ大きく抗原性は変化しました。すなわち、本来の宿主ではないほ乳類由来の細胞で累代継代したために抗原変異が起きたのです。この変異したウイルスを鶏由来の鶏胎児細胞でさらに増殖を繰り返したところ、抗原性は元に戻ってきました[表1]。
次に、このBe-42株に対する免疫血清を新たに作成し、Be-42株を完全に中和して感染力を消滅させる抗血清の濃度を調べた後、ウイルスの感染力を完全に消滅させる手前の濃度の抗血清存在下でこのウイルス株を連続して増殖させました。免疫圧力をこのウイルスにかけて変異を誘発したのです。その結果、わずかな継代で、このウイルス株を完全に中和させるためには、非常に高い濃度の抗血清が必要になりました。すなわち、このウイルス株は、免疫圧力を加えられることにより抗原性が大きく変化したのです。
以上の実験から、鳥類のコロナウイルスであるIBウイルスは、少なくとも試験管内では哺乳類由来の細胞で増殖することができ、その細胞で増殖を繰り返している間に変異を起こすウイルスであることが証明されました。
残念ながら、IBウイルスが哺乳類に感染できるか否か、動物を用いて調べるまでには至りませんでした。
IBウイルスは病型でも変異が起きる
ところで、IBウイルスには、鶏の呼吸器で旺盛に増殖して強い呼吸器症状を起こす(呼吸器病型)ウイルスと、呼吸器で増殖するが腎臓で旺盛に増殖し腎炎を起こす致死性の高い(腎炎型)ウイルスが存在します。筆者は、IBウイルスの病型を変えることは可能と考え、以下の実験を行いました。
すなわち、呼吸器病型のIBウイルスを腎炎型のIBウイルスに変化させ、逆に腎炎型のウイルスを呼吸器病型に変えるという試みです。野外では、このような変異が起きているのではないかと考えたのです。
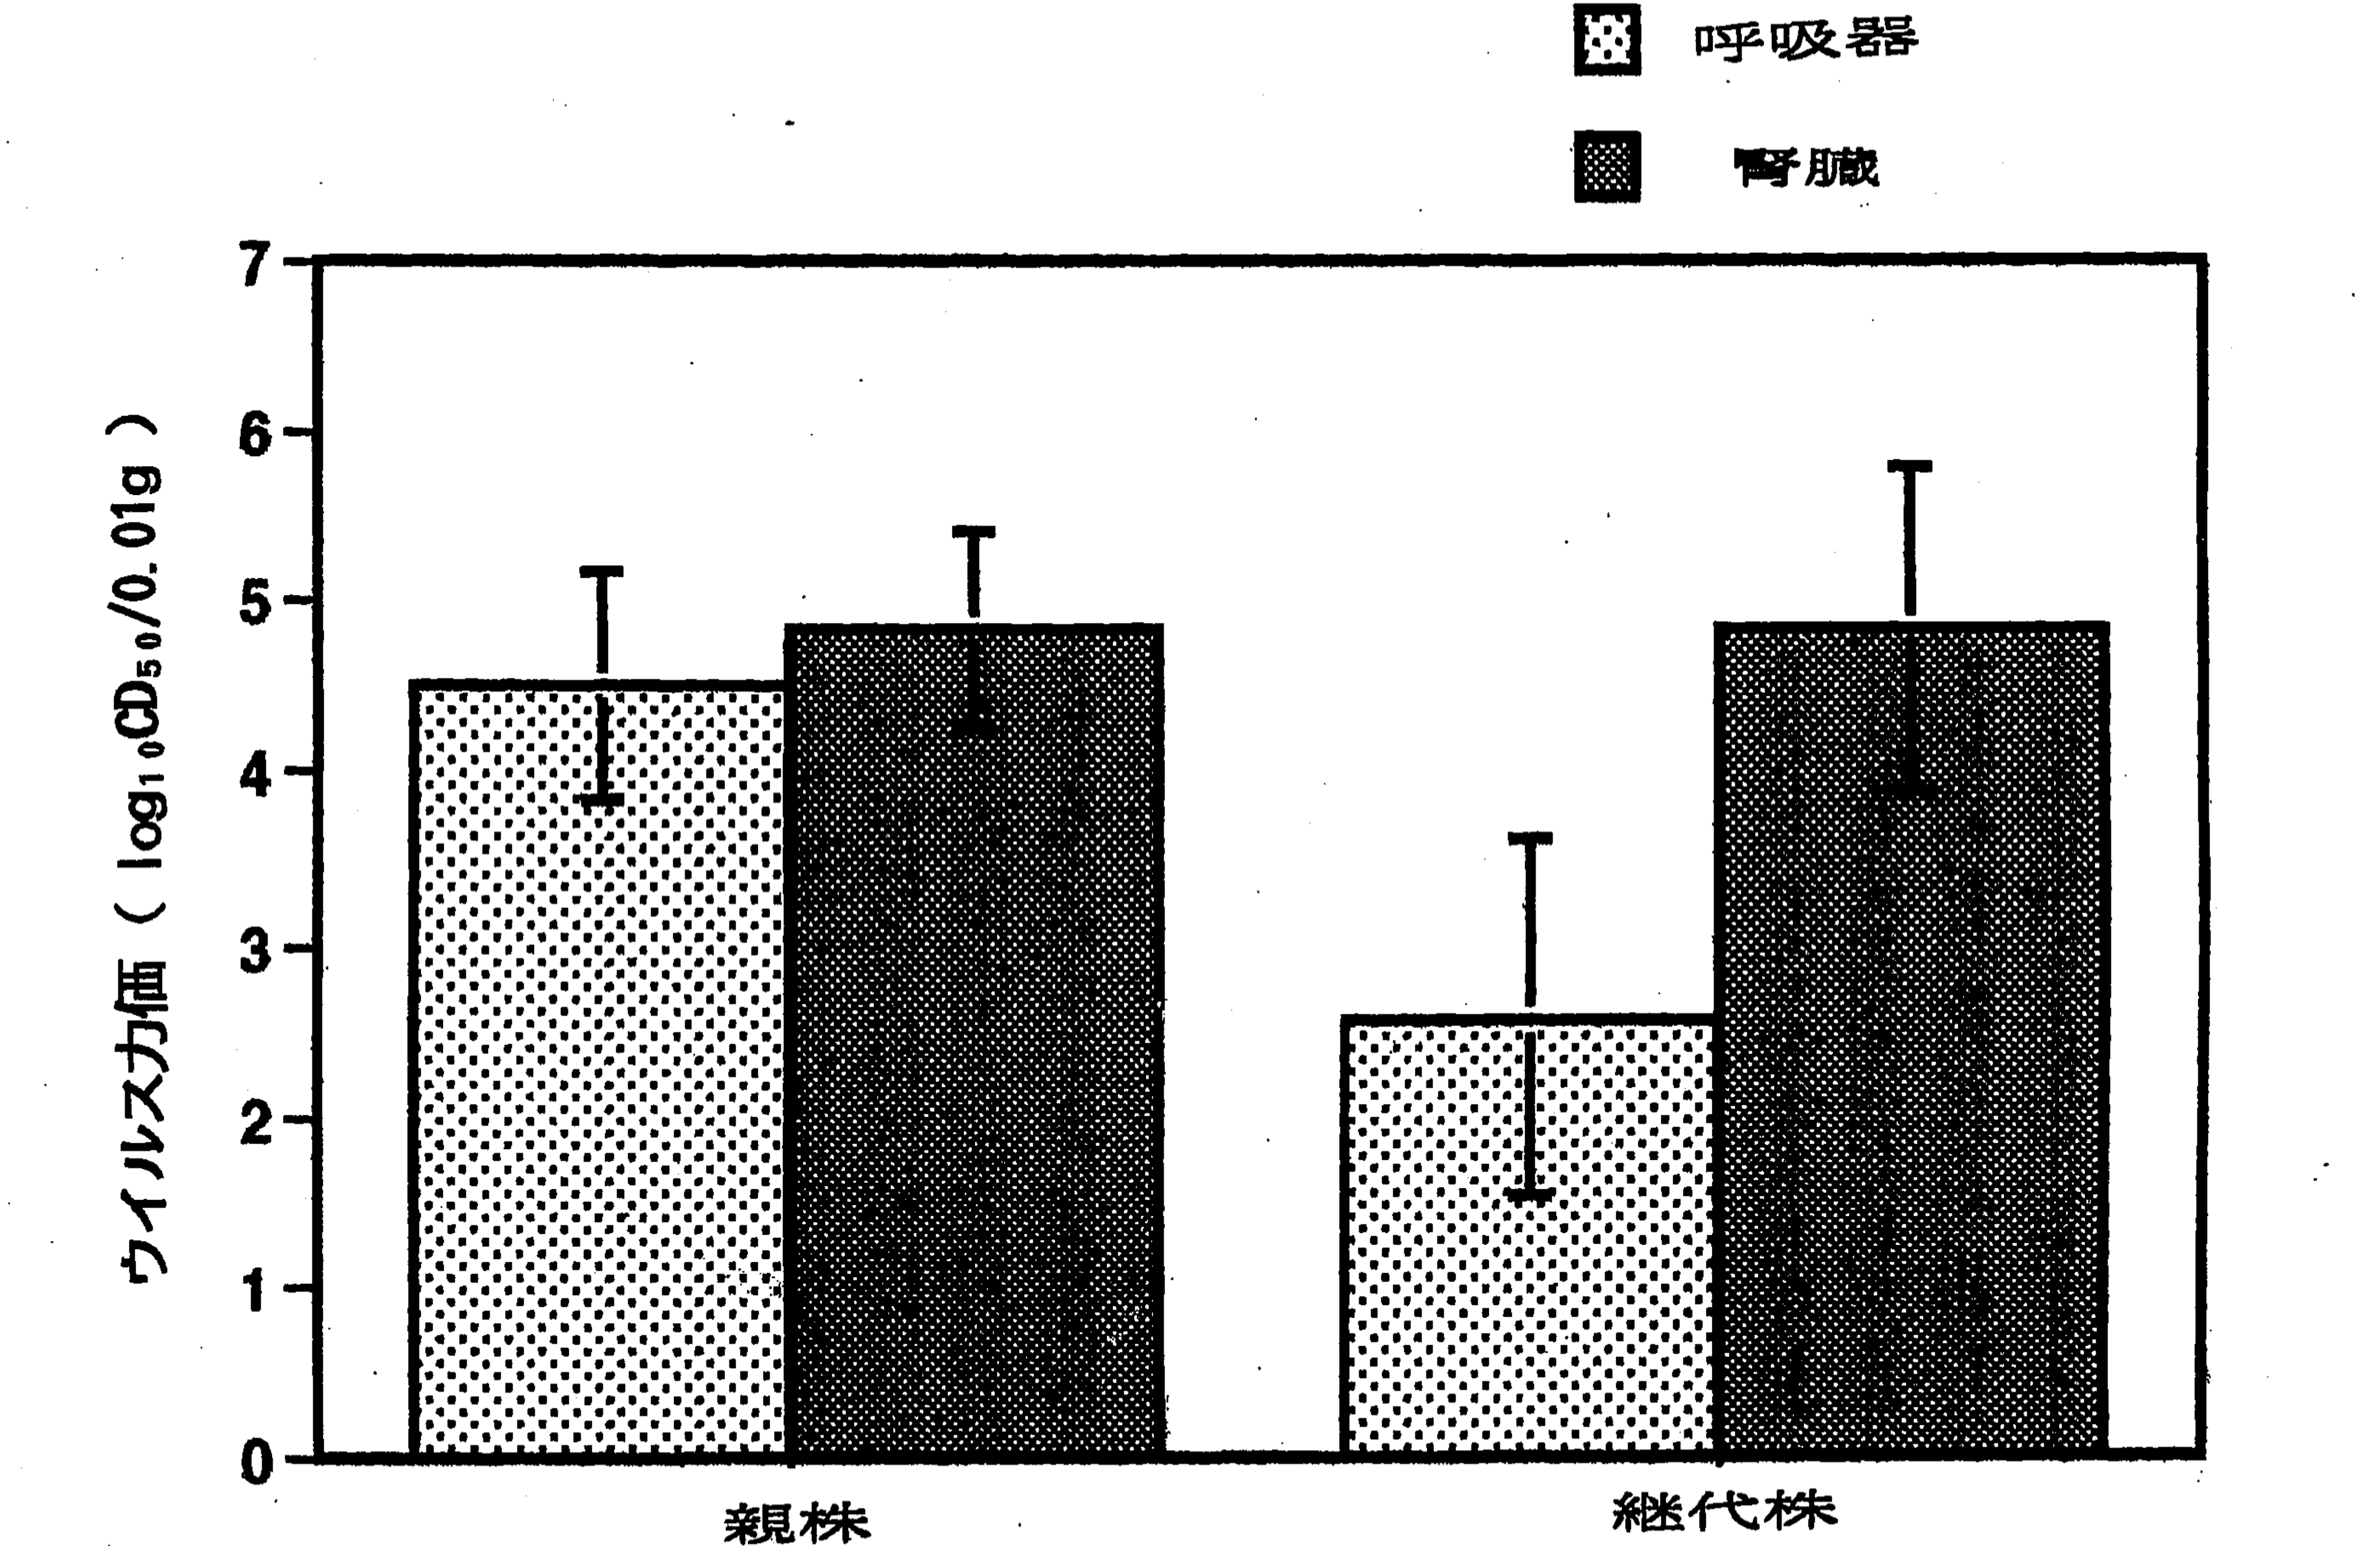
実験方法としては、アメリカで分離された呼吸器病型ウイルスConnecticut-A5968(A5968)株をヒナの総排泄腔(鳥類では肛門と尿道口が一つになっています)に接種し、数日後にそのヒナから腎臓を摘出して乳剤を作成し、その乳剤を別のヒナの総排泄腔に接種するものです。この方法を10回繰り返すことによりウイルスを継代しました。
逆に筆者たちが分離した腎炎型ウイルス鹿児島―34株を気管内接種でヒナに感染させ、数日後に肺と気管を摘出し、乳剤を作成し、別のヒナの気管内に接種するという実験を行いました。その方法でのウイルス感染を10回繰り返しました。なお、後者の実験では呼吸器病型ウイルスとして筆者たちが野外例から分離した鳥取-2株を使用しています。
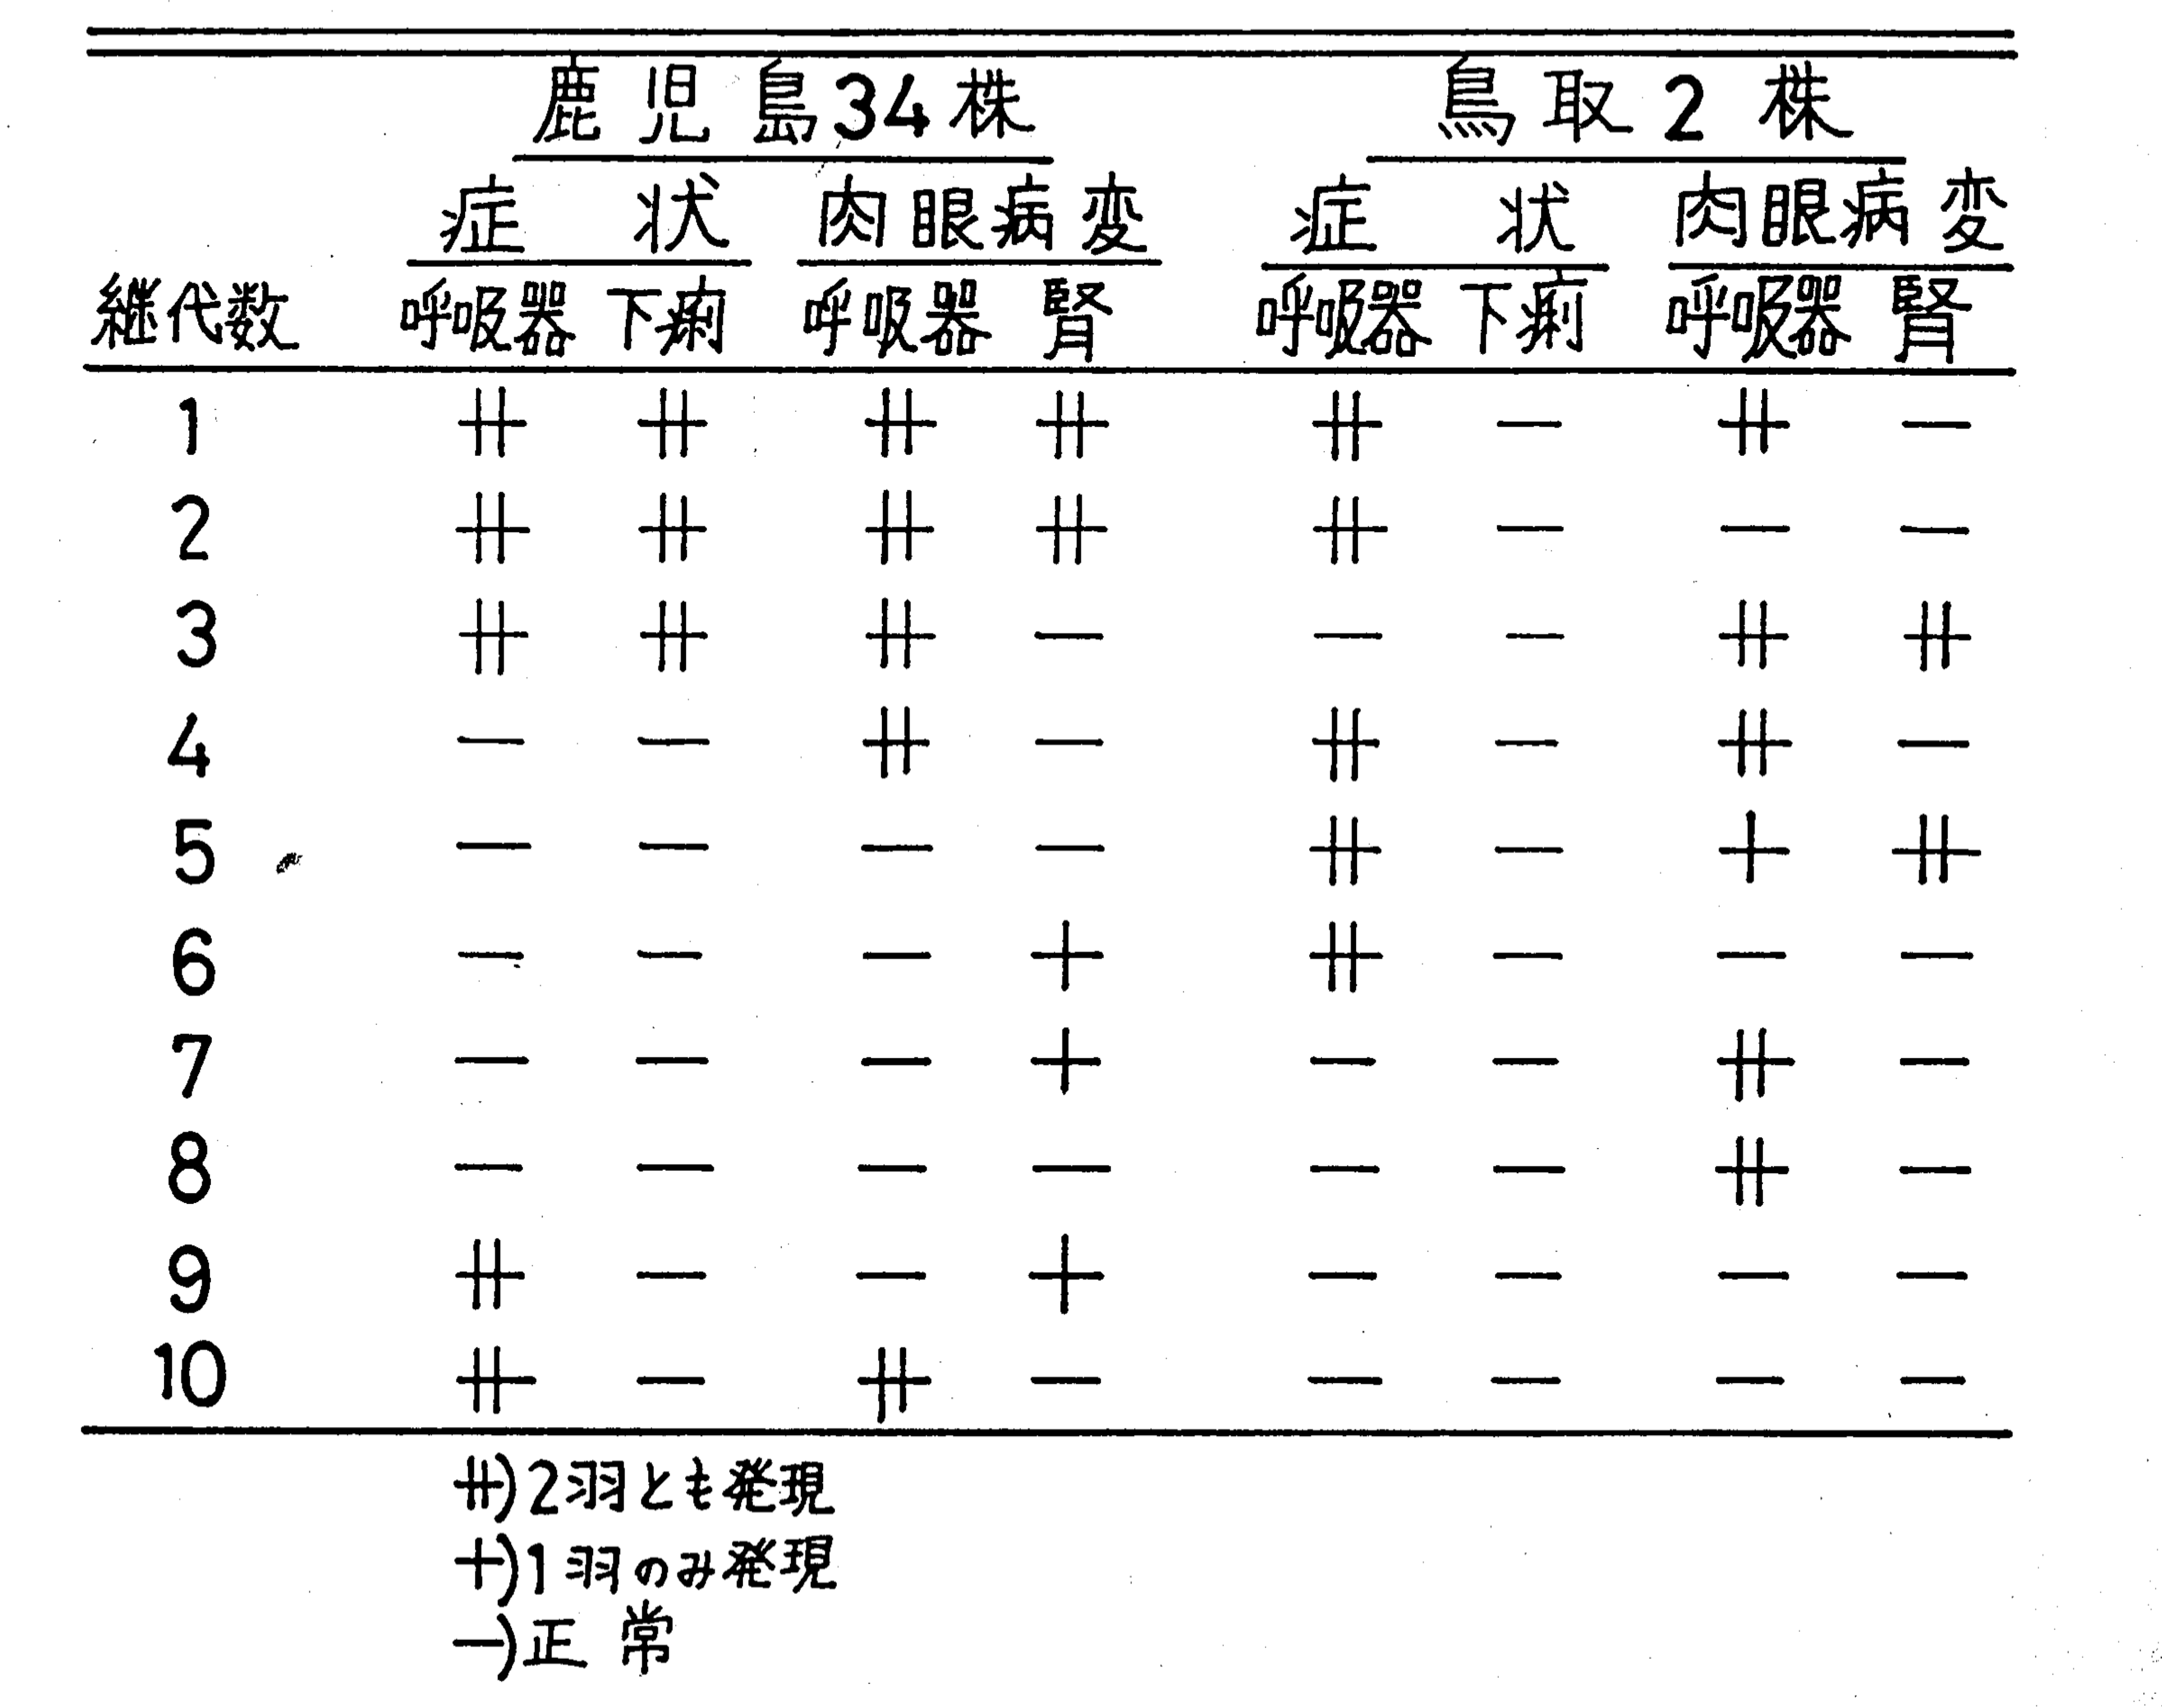
その結果、IBウイルスの病型は変わりました。すなわち、呼吸器病型ウイルスから腎炎型ウイルスへ[図4]、腎炎型ウイルスから呼吸器病型ウイルスに変わったのです[表2]。
この実験では、さらに興味深い実験データが得られています。上記の2株のIBウイルスが増殖した呼吸器と腎臓から回収されたそれぞれのウイルスの抗原性の比較も行ったのですが、同一鶏個体の呼吸器と腎臓から回収されたウイルスの抗原性は、同じウイルス株であるにもかかわらず、明らかな違いが認められました[図5]。
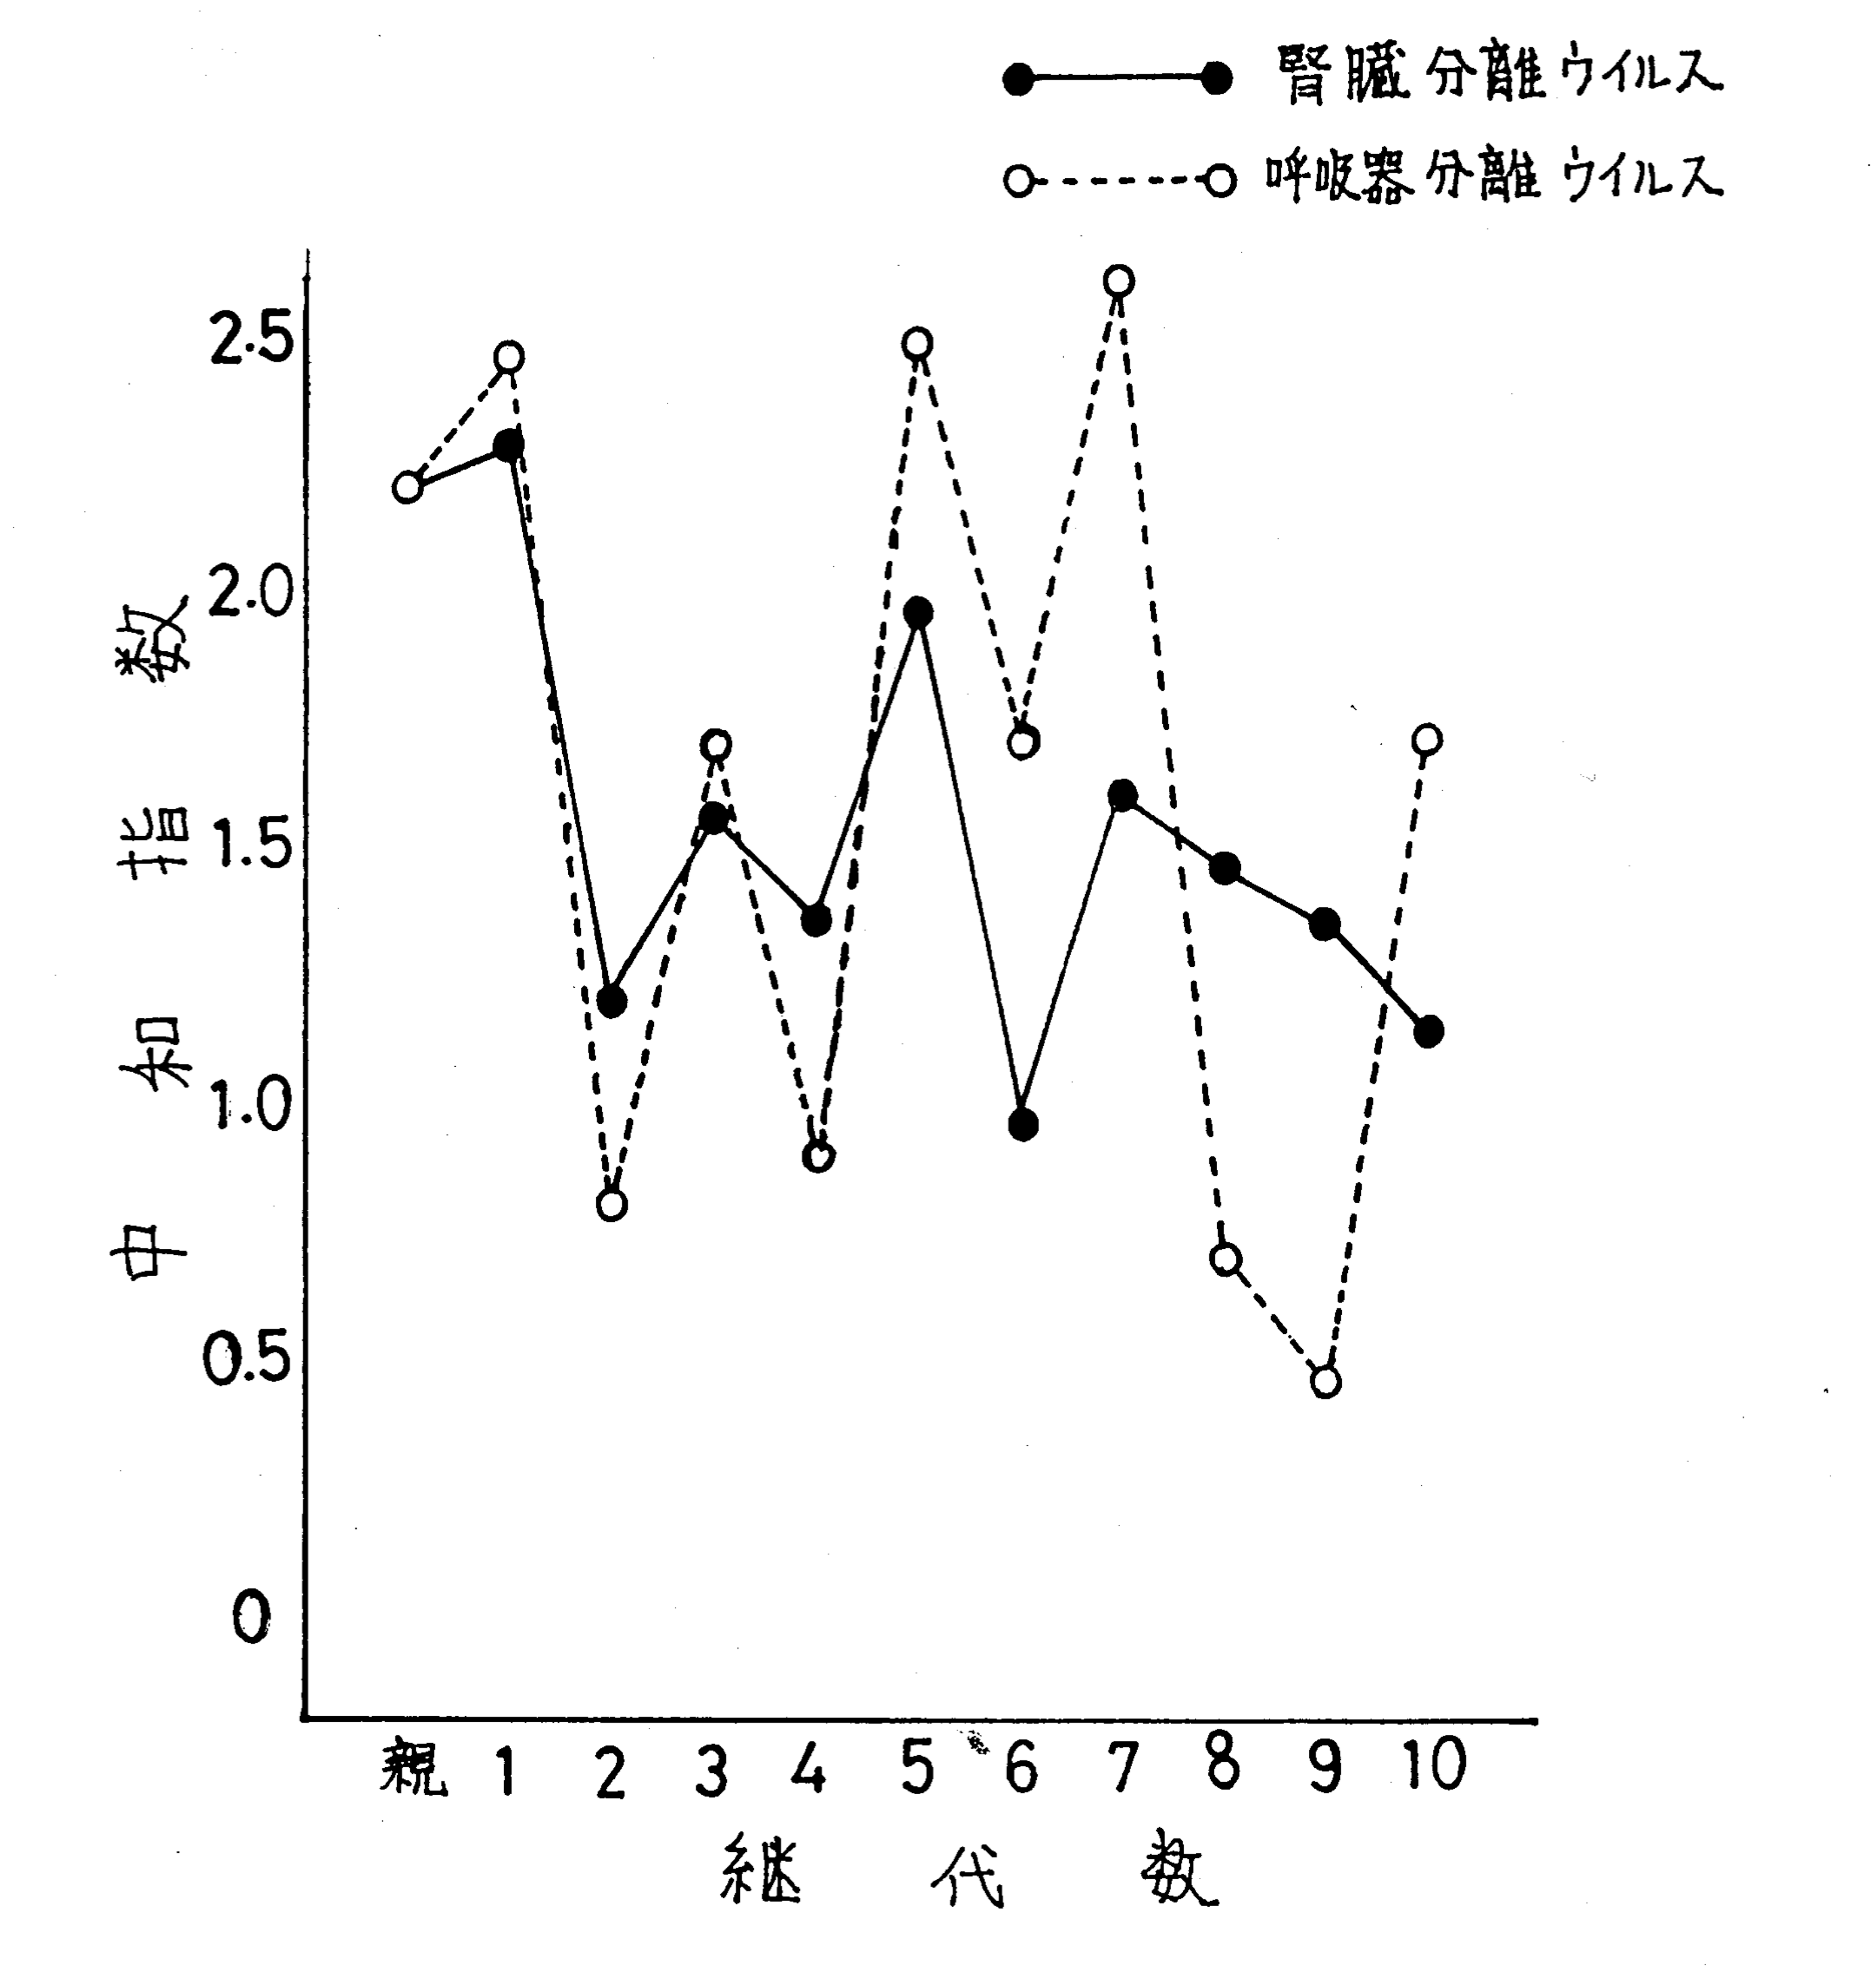
すなわち、呼吸器で増殖したウイルスとは別の性質を持ったウイルスが腎臓で増殖していたのです。
変異の本体
これらの実験から、鳥類のコロナウイルスであるIBウイルスは、様々な変異を頻繁に起こすウイルスであることが明らかになりました。さらに、変異が起きる要因として、筆者たちは、IBウイルス株は、均一な性質を持つウイルス集団から成り立っているのではなく、様々なバラエティーに富んだ性質を持つ、数多くのsubpopulation(小集団)から構成されているという結論に達しました。
IBウイルス株を構成する様々なsubpopulationのバランスに変化が生じた時に、このコロナウイルスに「変異」という現象が認められる、その変異も様々(抗原性、病原性、臓器嗜好性など)であるということです。
IBウイルスが増殖する環境あるいは宿主の状態が違えば、優勢に増殖するsubpopulationはその都度異なり、優勢に増殖したsubpopulationの性状がその時のウイルス性状としてとらえられるのではないかと考えています。
しかし、筆者たちは、鳥のコロナウイルスであるIBウイルスが、ほ乳類に感染できるコロナウイルスに変わり得るか否かという宿主域を変えることを目的とする生体を用いる実験を行うまでには至らなかったのは現在でも残念に思っています。
同一ウイルス株でも、感染する動物種が異なれば異なる病像を呈することは、鳥インフルエンザウイルスで実験的に私たちは確認しています。また、幼若なヒナにIBウイルスが感染した場合、持続感染が成立することも認めています(前回紹介)。
私たちが鳥類のコロナウイルスを用いた実験で得られた成績が、そのまま今回の新型コロナウイルス肺炎に反映することはないと考えています。しかし、共通する部分もあると考え、紹介した次第です。
養鶏場で興味深いIB発生ケースを私たちは見ています。鶏が示すIBウイルス感染態度は、鶏の飼育状況、特に鶏舎の衛生状態に大きく左右されるようです。
すなわち、飼育密度が高く、飼育環境が劣悪で、衛生状態の悪い汚れた鶏舎で飼育されている、大きなストレスのかかっている鶏にIB生ワクチンを接種した場合(IB生ワクチンウイルス株の鶏に対する病原性は、ほとんど認められなくなるまで高度に減毒されています)、ワクチン接種ヒナに重篤なIBの症状の発現する場合があります。
逆に、衛生状態の行き届いた理想的な環境で飼育されている、病原体に対する抵抗力の備わった鶏にIBワクチンを接種した場合、ワクチンウイルスの鶏への感染力が不十分で、抗体産生が微弱な状態で終始する場合もあります。
このような現象も、今回の新型コロナウイルス感染の場合に共通する部分があるように思われます。